


チーズ製造では生乳を低温殺菌しますが、UHT殺菌は行わないのが一般的です。その理由はレンネットを添加しても凝固しないためです。何故?実はまだよく分かっていないのです。でも、分かっていることもあります。
① カルシウムの溶解度は高温では低くなります。ホエイ中に分散していたカルシウムは溶解しにくくなり、カゼインミセルの表面に沈着します。ホエイ中のカルシウムイオンが減るとレンネットの活性が下がります。なので、生産効率を上げるために、乳に少量のカルシウムを添加します。しかし、レンネットによって切り出されるκ-カゼインマクロペプチド(CMPあるいはGMP)の量はほぼ同じですから、レンネット活性の問題ではありません。
② ホエイたんぱく質は球状たんぱく質で、分子の外側が親水性、内側が疎水性となっています。加熱変性すると、ホエイたんぱく質の球状構造はほどけて(unfolding)、分子の外側に疎水性領域が顔を出してきます。加熱温度により変性のレベルは異なりますが、カゼインミセルのκ-カゼインと変性したホエイたんぱく質のシステインはS-S結合(-SH + -SH → S-S)します。あるいは、変性ホエイたんぱく質の疎水性領域とカゼインミセルの疎水性領域が疎水性相互作用する可能性もあります。
③ UHT殺菌するとκ-カゼインがカゼインミセルから離脱することが分かっています。低温殺菌の場合には皆様もよくご存じのように、レンネットによりκ-カゼインマクロペプチド(CMP)が切り出され、ミセル表面の親水性が低下することが凝固の第一歩です。であるならば、κ-カゼインがミセルから離脱しても凝固の始まりとなるのではないかと思います。しかし、凝固には至りません。また、何故離脱するのでしょうか?
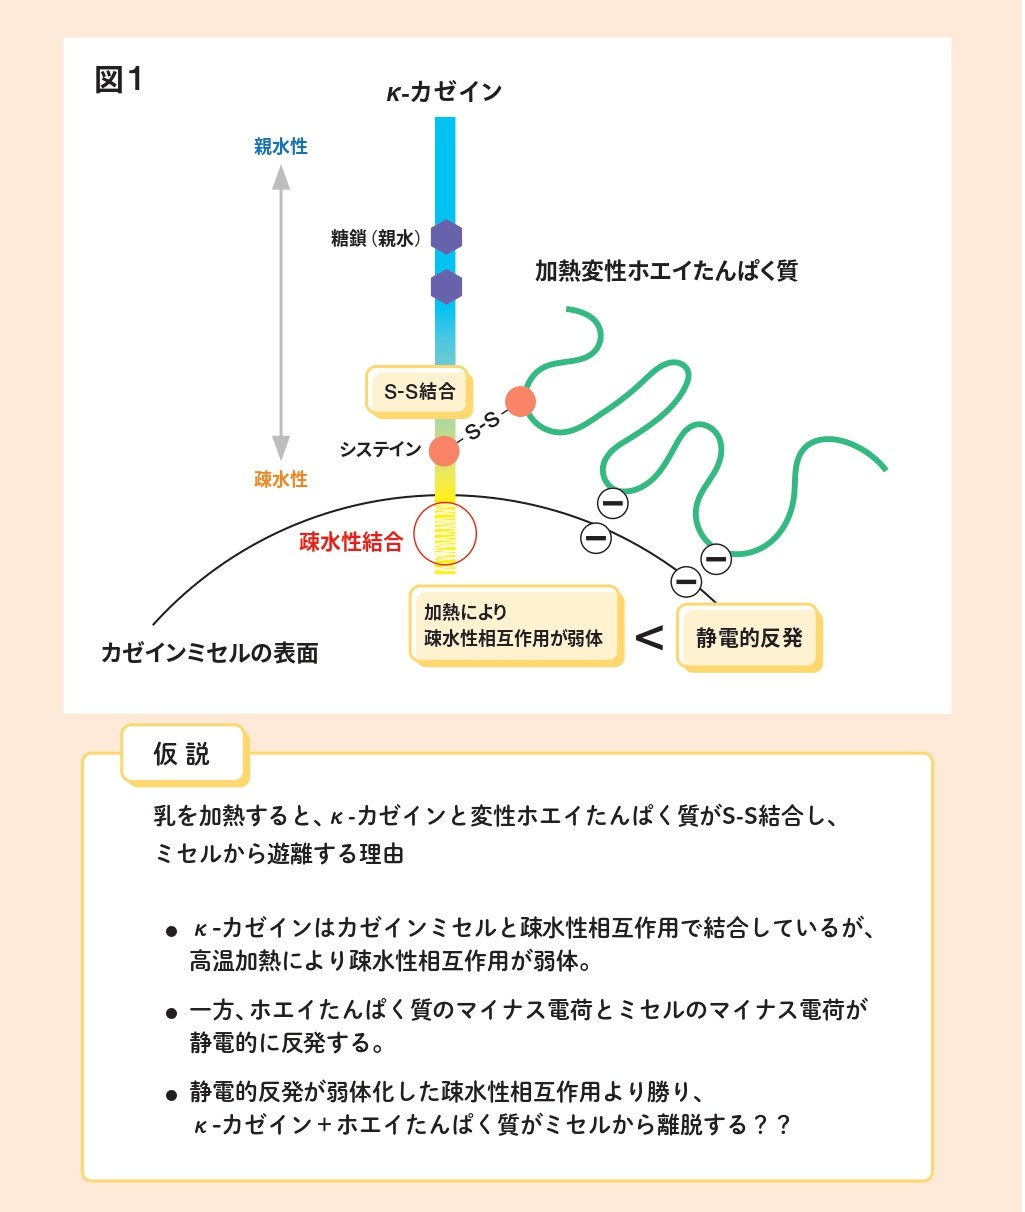
ここから先は私の個人的推測です(図参照)。カゼインミセルが水に安定的に分散しているか、凝集しカードを形成するかはミセル表面の物理的な性質で決まります。すなわち、親水的(水と親和性がある、アスパラギン酸やグルタミン酸の側鎖であるCOO-やリジンやアルギニンのNH3+などの電荷(マイナスやプラス)、糖鎖やスレオニンのOHなど)な性質と疎水性領域(フェニルアラニンやチロシン)があります。そして、これらのどちらが優勢かによりカゼインミセルが安定的に分散するか凝集するかが決まると考えます。生乳では親水勢力が疎水勢力より勝っているのに対し、チーズでは疎水領域が上回っています。また、pHが下がってくると、COO-がCOOHとなります。プラスの電荷数とマイナスの電荷数が等しくなるとミセル表面の電荷がゼロとなります。その結果、疎水性が親水性を上回り、凝集します(等電点沈殿)。
一方、加熱変性したホエイたんぱく質は球状構造からランダム構造となり、疎水領域と親水領域(主としてマイナス電荷)がカゼインミセルと接触し得るようになります。さらに、κ-カゼインに1個あるシステインとホエイたんぱく質がS-S結合します。その結果、カゼインミセルの表面にはホエイたんぱく質による疎水性相互作用と静電気的相互作用(主としてマイナス電荷どうしによる反発)が働き、静電気的反発が疎水性相互作用より勝っていれば、κ-カゼイン+ホエイたんぱく質はミセルから離脱する可能性があります。
しかし、κ-カゼインが離脱した状態でレンネットを作用させても凝固は起こりません。本来なら、レンネットがκ-カゼインに作用し親水性ペプチドであるCMPを切り出し、凝固が始まります。つまり、κ-カゼインの親水性ペプチド(CMP)が外れたκ-カゼイン(パラκ-カゼイン)のある/なしでレンネット凝固が決まるのです。不思議ですね。何故?分かりません。
「乳科学 マルド博士のミルク語り」は毎月20日に更新しています。
ⒸNPO法人チーズプロフェッショナル協会
禁無断転載